
陰山大輔先生の「男はつらいよ:昆虫編 オスだけを殺すウイルスのおはなし」を聴講して
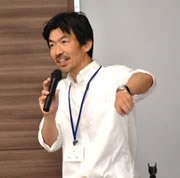
農業・食品産業技術総合研究機構 生物機能利用研究部門 陰山 大輔 先生
- 講義参照スライド 【男はつらいよ:昆虫篇-オスだけを殺すウイルスのおはなし-】 PDF7.9MB
はじめに
陰山先生は大学時代の卒業研究でアワノメイガの生まれた個体がすべてメスになる「全メス現象」を見つけたことをきっかけに、昆虫の性や生殖を操作する微生物の道に入った。現在は、農研機構の昆虫制御技術グループで共生微生物に着目し、「共生微生物による昆虫の生殖操作の解明とその応用利用」をテーマに、害虫防除への応用を目指して研究を行っている。
講義の概要
なぜオスを殺すのか?
アワノメイガという昆虫では、生まれた個体が全てメスになる全メス現象が起こることがある。これは親世代のメスへのボルバキア(Wolbachia pipientis)という細胞内共生バクテリアの感染が次世代へと母系遺伝し、オスになるはずの個体が孵化前後に死んでしまい次世代がメスのみになってしまう現象である。では、なぜオス個体は死亡してしまうのか?その要因として、遺伝子量補償という性染色体上の遺伝子発現レベルを雌雄でそろえる仕組みがあるためではないかと考えられている。
すなわち、ボルバキア非感染アワノメイガでは、性遺伝子ZZをもつ個体がオスになる。その際、Zが負の調節を受け(遺伝子量補償)、性遺伝子ZWをもつメスのもつトータルZレベルと同等になる。一方ボルバキア感染系統では、オス性染色体Z遺伝子発現レベルが負に調節されないため、トータルZレベルが過剰になり、致死になる。
アワノメイガによらず昆虫は普遍的に選択的スプライシングを担う遺伝子Dsxをもち、その上流の性決定遺伝子Mascのスイッチングにより性が選択される。スイッチONでオスになり、このときに正常個体であれば遺伝子量補償がなされるが、ボルバキア側のOscarと呼ばれるタンパク質がMascと相互作用し、Mascの発現が抑えられることでスイッチONの際に起こるべき遺伝子量補償を阻害してしまう。これがオス殺しの原因である。この現象は、アワノメイガだけでなくチャハマキからも発見されている。
このように母系遺伝する場合、共生微生物はオスに感染しても次世代に伝播されず、宿主の致死を待つのみである。
しかし、なぜオスを殺すのか?大きく3つの仮説が提唱されており、資源再配分、共食い、近親交配の観点から宿主にメリットがあると考えられている。まず、オスの致死により個体数が減少し、資源再配分によって残るメスの生存率が上がる。それに伴い、資源の競合も抑えられ、共食いによる個体数減少のリスクが軽減される。テントウムシなどでは、孵化しなかった卵は、孵化した個体によって食べられることが知られており、特に周囲に餌が枯渇している状況では生存に極めて有利に働くと考えられる。さらに、同系統の同世代のオスが死亡するため、近親交配も回避することができる。しかし、これらはあくまでも仮説であり、実際になぜオスのみを殺すのかは分かっていない。
オスだけを殺すウイルスとは?
このようなオス殺し微生物は多様性に富んでおり、細菌だけでなく原生生物やウイルスでも発見されており、代表的なウイルスとして挙げられるのがパルティティウイルスである。ヤマカオジロショウジョウバエで見つかったオス殺しウイルスであり、このようにバクテリアや植物を宿主とするウイルスが昆虫に感染するというのは非常に稀な現象であると考えられる。フィルターに通した全メス系統成虫のインジェクションによって明らかになった。抽出したTotal RNAからリボソームRNAを除去し、RNA-seqで網羅的に配列を読んだ結果、全メス系統のみで4つの遺伝子が高発現していた。そのウイルス全長配列を確定すると、dsRNA1からdsRNA4の5’および3’UTRの末端配列が一致しており、同じウイルスの異なるセグメントであると結論付けられた。そこで、RNA発現とオス-メスの個体比を比較したところ、dsRNA4がオス殺しに必要であると推定された。これをキイロショウジョウバエに強制発現させて検証したところオス殺しが発生し、dsRNA4から発現するPVMKp1が原因遺伝子であると示された。
多様なオス殺し原因遺伝子
オス殺しの原因遺伝子は先に挙げたPVMKp1の他にも多くの遺伝子が同定されているが、なぜ多くのオス殺し遺伝子が存在しているのだろうか?これには宿主側のサプレッサーが大きく関与している。オス殺しが拡散すると集団内のオス個体数は減少するため、オス殺しを抑制可能な変異体は急速に選択され、オスバイアスへと変動する。実際、リュウキュウムラサキ(蝶)はボルバキアによりオスが1%にとどまっていたが、5年ほどで1:1まで回復したという例もある。このようなオス殺しに対する宿主側のサプレッサーは様々な昆虫で見つかっており、進化的軍拡競争によって、宿主側の生存への道がサプレッサーを介して拡散したと考えられる。
ボルバキアを利用したウイルス抑制
ボルバキアは宿主のオスを殺すだけでなく、宿主でのウイルス増殖が不可能になるという現象も発見されている。これを昆虫媒介性のウイルス病の抑制に活用するという動きもあるが、そこで問題となるのがボスバキアの生態である。ボルバキアは本来、細胞内共生バクテリアであり、昆虫の細胞内でしか生存できないため、研究室で培養することができない。そこで取り入れられたのが個体群置換であり、ボルバキア宿主の感染系統を個体群で入れ替えることが可能になった。ボルバキアによる性転換は細胞質不和合であり、感染メスではオスの感染の有無に関わらず正常に孵化するが、非感染メスと感染オスの交配では孵化できない。つまり、メスのみがボルバキアに感染すれば、次世代はボルバキアを保有することになる。そして、ボルバキア保有のオスは死亡するため、個体群におけるボルバキア保有のメスの割合が増加していく。すなわち、ボルバキア感染前後で、個体群におけるボルバキア保有宿主の割合が大きく変化するのである。
これを利用したのがデング熱の流行の抑制の試みである。ボルバキア感染蚊の個体内ではデングウイルスやチクングニアウイルスは増殖できないことがわかっている。さらにオスの蚊が減少することで蚊の発生自体が抑制される可能性もある。そこで、ボルバキア保有の蚊を人工的に作り出し、それらを野外に放つことで野生の蚊によるデング熱の感染伝播を抑制し、それによって患者の発生を抑えようという試みが世界各地でなされている。かなりの成功を収めており、今後注目したい。
感想
私は植物ウイルスを扱って研究しているため、今回は昆虫ウイルスに関するお話を拝聴できる非常に貴重な機会でした。オス殺しという現象そのものが生態系において珍しいように思いますが、オスを殺すという行為は宿主と共生者のどちらにも大きなメリットがないように感じるため不思議に感じていました。しかし、母系遺伝する性質や、宿主内でしか生存できないことから、オスのみを殺すというのが生存戦略として理にかなっており、興味深かったです。ウイルスの奥深さに改めて触れる有意義な時間となりました。
最後に、陰山先生を始めとするご講演くださった先生方、西村先生、仙台医療センターのスタッフの皆様に厚く御礼申し上げます。
執筆者
上野結菜 東北大学大学院 修士1年
外来受付時間
CLICK
初めての方
8:00~11:00
2回目以降予約の方
8:00~
2回目以降予約以外の方
8:00~11:00
※診療科によっては予約がないと当日受診できない場合もございます。